Role of tryptophan metabolism and the AHR on breast cancer
Breast cancer (BC) is one of the most common malignancies among women worldwide. In BC, cells increase their metabolism by regulating multiple metabolic pathways. In this descriptive review, recent literature indexed in PubMed was reviewed, and the current state of knowledge on tryptophan (Trp) metabolism, the kynurenine (Kyn) pathway and its derived metabolites, their relationship with aryl hydrocarbon receptor (AHR)-mediated signaling in BC, and their potential as a therapeutic target was discussed. Three Trp catabolism enzymes are overexpressed in breast cancer: indolamine-2,3-dioxygenase 1 and 2 (IDO1/2) and tryptophan-2,3-dioxygenase 2 (TDO2). They catalyze the degradation step from Trp to Kyn an AHR ligand. The AHR is a transcription factor characterized by its role in mediating toxicity and adaptive responses to polycyclic aromatic hydrocarbons and has been detected overexpressed in breast tumors. Kyn and other metabolites derived from Trp activate signaling pathways through the AHR, which stimulates IDO1 expression, increasing Kyn levels and promoting an immunosuppressive circuit. Furthermore, substantial evidence has shown that this mechanism drives the progression of BC. The idea of inhibiting these molecules has aroused great expectations to find new drugs for BC therapy.
RESUMEN
El cáncer de mama (CaMa) es una de las neoplasias malignas más comunes entre las mujeres en todo el mundo, en el que las células incrementan su metabolismo mediante la regulación de múltiples vías metabólicas. En la presente revisión descriptiva, se analizó la literatura indexada reciente en PubMed y se discute el estado actual del conocimiento sobre el metabolismo del triptófano (Trp), la vía de la quinurenina (Kyn) y sus metabolitos derivados, su relación con la señalización mediada por el receptor para hidrocarburos de arilo (AHR) en el CaMa, así como su potencial como blanco terapéutico. Tres enzimas del metabolismo del Trp están sobreexpresadas en el CaMa: la indolamina-2,3-dioxigenasa 1 y 2 (IDO1/2), y la triptófano-2,3-dioxigenasa 2 (TDO2), las cuales catalizan la degradación del Trp a Kyn, ligando del AHR. Éste es un factor de transcripción que se ha caracterizado por su papel como mediador de las respuestas adaptativas ante los hidrocarburos aromáticos policíclicos. La sobreexpresión de este factor de transcripción se ha observado en varios tipos de tumores, incluido el de mama. Al activar el AHR, la Kyn y otros metabolitos derivados del Trp estimulan la expresión de la enzima IDO1, lo que provoca un aumento de los niveles de Kyn. Por otro lado, la activación del AHR modifica la respuesta inmune generando un circuito inmunosupresor que favorece la progresión del CaMa. La estrategia de inhibir estas moléculas ha suscitado grandes expectativas en el diseño de nuevos fármacos para el tratamento del CaMa.
INTRODUCCIÓN
El cáncer de mama (CaMa) es uno de los tipos de cáncer diagnosticados con mayor frecuencia en las mujeres a nivel mundial, con una incidencia en 2020 del 24.5 % y una tasa de mortalidad del 15.5 % (1). El CaMa es una patología heterogénea que clínicamente se define por los siguientes receptores hormonales: el receptor de estrógenos (RE), el receptor de progesterona (PR) y el receptor 2 del factor de crecimiento epidérmico humano (HER2). En condiciones normales, estos receptores desempeñan un papel importante en el crecimiento y desarrollo de las células epiteliales de la glándula mamaria (2). Sin embargo, la generación de múltiples copias o mutaciones de los genes que codifican estos receptores resulta en una producción alterada de estas proteínas, que transmiten señales a las células para que se dividan, se multipliquen y crezcan a mayor velocidad que las células normales, lo que contribuye a la progresión del CaMa (3). La expresión diferencial de los citados receptores permite establecer un criterio de clasificación que distingue cinco subtipos principales de CaMa (Tabla 1) (4).
Tabla 1. Subtipos moleculares de CaMa. (Basado en (5)).
|
SUBTIPO |
ER |
PR |
HER2 |
Características relevantes |
|
Luminal A |
+ |
+ |
– |
ER+ y PR+. Expresión muy marcada de ER+ y PR+; HER2–. Tasa baja de proliferación. Bajo grado. Histología del tejido cribiforme tubular y lobular clásico. Tiene buen pronóstico. |
|
Luminal B HER2– |
+ |
– |
– |
HER2– y ER+. Con menor expresión de ER y PR que en luminal A. Alto grado. Histología de tejido micropapilar y pleiomorfo lobulillar. Tiene pronóstico intermedio. |
|
Luminal B HER2+ |
+ |
– |
+ |
HER2+ y ER+. Con menor expresión de ER y PR que en luminal A. Alto grado. Responde a las terapias. Pronóstico intermedio. |
|
HER2-enriquecido no luminal |
– |
– |
+ |
ER–, PR–, y HER2+. Alto grado. Enfermedad agresiva que responde a terapias dirigidas. Tiene pronóstico intermedio. |
|
Triple-negativo |
– |
– |
– |
ER–, PR– y HER2–. Alto grado. Metaplásico. Histología de tejido adenoide quístico. Tiene un mal pronóstico. |
Abreviaturas: ER (Receptor de Estrógeno), PR (Receptor de Progesterona) y HER2 (Receptor 2 del Factor de Crecimiento Epidérmico Humano).
Además de las alteraciones en la expresión de los receptores nucleares, las células derivadas de esta neoplasia presentan una amplia gama de modificaciones celulares, entre las que destacan las que inciden en vías metabólicas, como la del triptófano (Trp).
Metabolismo del Trp, el sistema inmune y CaMa
El Trp es un aminoácido esencial. Es el menos abundante intracelularmente y se estima que un tercio del contenido total proviene de la ingesta de alimentos, mientras que el resto proviene de la degradación de proteínas (6). El Trp es importante para la síntesis de proteínas y es precursor de diversos compuestos biológicamente activos, como la serotonina y la melatonina. El 95 % del Trp se metaboliza por la vía de la quinurenina (Kyn) en los epitelios y en las células del sistema inmunológico. El resto se metaboliza a través de la vía de la serotonina y de la microbiota intestinal (Figura 1).
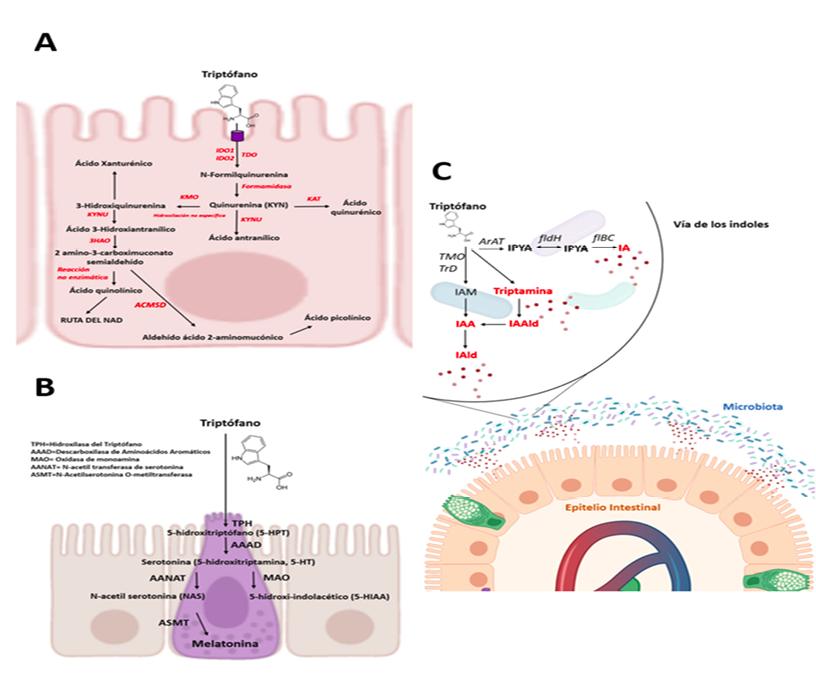
Figura 1. Metabolismo del triptófano. El Trp es transportado por el sistema de transporte de aminoácidos neutros LAT1 (SLC7A), ASCT2 (SLC1A5) y B0AT1 (SLC6A19). Una vez incorporado intracelularmente, es metabolizado mediante distintas vías. A) Vía de la quinurenina (Kyn). Es la principal vía metabólica del Trp, conocida como la vía de la Kyn, que ocurre en los epitelios y en las células del sistema inmune. B) Vía de la serotonina. Es la segunda ruta metabólica responsable del 2% del Trp incorporado en las células enterocromafines. C) Vía del indol. Depende de la microbiota intestinal y convierte alrededor del 3% del Trp en algún metabolito derivado del indol (ver detalles en el texto). Imagen creada con BioRender.com.
Los metabolitos derivados del catabolismo del Trp son bioactivos y modulan rutas metabólicas celulares y respuestas fisiológicas implicadas en enfermedades como el cáncer. Particularmente, se ha asociado la hiperactivación de componentes de la vía de la Kyn con una supresión inmunitaria y con el desarrollo del CaMa.
En biopsias de pacientes con el subtipo de CaMa triple negativo y el subtipo HER2-enriquecido, se encuentra elevada la expresión de la indolamina 2,3-dioxigenasa 1 (IDO1), una enzima que cataliza la degradación del Trp por la vía de la Kyn (7). Esto es consistente con la relación de la concentración sérica de Kyn/Trp en pacientes con CaMa del mismo subtipo, lo que indica una mayor actividad de la IDO1 en el tejido tumoral (7). Como resultado de lo anterior, hay un incremento en los niveles de Kyn y una disminución del Trp, que, a su vez, por un mecanismo mediado por la vía de señalización dependiente del control general no depresible 2 (GCN2), inhibe la proliferación y promueve la apoptosis mediada por Fas de los linfocitos T citotóxicos (Tc) y T cooperadores (Th), encargados de la vigilancia inmunológica tisular (8). El impacto final en el sistema inmunitario es un desequilibrio entre las poblaciones de linfocitos Tc, Th y T reguladores (Tregs), siendo estas últimas las que proliferan, maduran y predominan en el microambiente del tejido tumoral, lo que provoca inmunosupresión (8). Otro componente de la vía de la Kyn que se encuentra sobreexpresado en el CaMa es la triptófano 2,3-dioxigenasa 2 (TDO2), también involucrada en el catabolismo del Trp, particularmente en el subtipo HER2-enriquecido de CaMa (ER–, PR–, HER2+), lo que provoca un incremento de Kyn y promueve un microambiente inmunosupresivo (9). Los efectos inmunomoduladores de los metabolitos del Trp, en particular los de la Kyn, están mediados por el receptor para hidrocarburos de arilo (AHR).
El AHR y el CaMa
La vía de señalización del AHR se describió a partir de una gran cantidad de estudios farmacológicos y toxicológicos que buscaban dilucidar el mecanismo de respuesta ante un grupo de tóxicos ambientales de la familia de los hidrocarburos aromáticos policíclicos, como el benzo[a]pireno y las dioxinas clorinadas, como la 2,3,7,8-tetraclorodibenzo-p-dioxina (TCDD) (10). La ruta de señalización del AHR más estudiada ha sido la ruta canónica, también llamada del “metabolismo adaptativo”, en la que se induce la expresión de enzimas de las subfamilias de los citocromos P450 CYP1A y CYP1B, que participan en la hidroxilación de tóxicos para facilitar su excreción (10). En ausencia de ligando, el AHR se encuentra en el citoplasma de la célula, formando un complejo con la proteína chaperona de choque térmico de 90 kDa (Hsp90), la proteína de interacción con el AHR (AIP), la proteína Src y la proteína p23 (11). Al unirse a un ligando agonista, endógeno o exógeno, el AHR sufre un cambio conformacional que reorganiza el complejo proteico, lo que permite la presentación de la secuencia de localización nuclear en el extremo N-terminal del AHR. Esto lleva a que el AHR se disocie de las proteínas Src y AIP y se transloque al núcleo, donde se disocia de Hsp90 y p23 para heterodimerizar con su socio nuclear, el translocador nuclear del AHR (ARNT) y con otros coactivadores. El heterodímero AHR−ARNT se une a elementos de respuesta a AHR (AHRE, XRE, DRE) en la cromatina, lo que activa los promotores de genes diana, como CYP1A1 y CYP1B1 (Figura 2).
El control negativo de la actividad del AHR está a cargo de la proteína represora del AHR (AHRR), que dimeriza con ARNT y compite por la ocupación de los elementos de respuesta al AHR. Otros mecanismos de control del AHR reducen su actividad y su vida media e incluyen la ubiquitinación, la degradación proteasomal y la ADP-ribosilación mediada por la poli(ADP-ribosa) polimerasa inducible por TCDD (TIPARP) (10). Aunque esta ruta de señalización del AHR corresponde a la vía canónica o del “metabolismo adaptativo” para hacer frente a tóxicos (10), en los últimos años se han descrito interacciones del AHR con otros factores de transcripción, lo que revela el papel de este receptor en otros procesos importantes relacionados con la fisiología celular, tanto normal como patológica, como el cáncer.
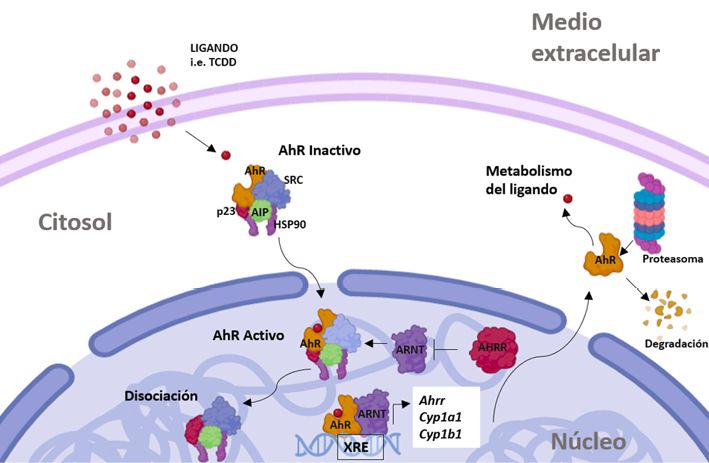
Figura 2. Vía de señalización genómica del AHR. En la ruta clásica de señalización, también llamada vía del “metabolismo adaptativo”, el receptor para hidrocarburos de arilo (AHR) forma un complejo con la proteína de choque térmico de 90 kDa (HSP90), la proteína que interactúa con el AHR (AIP), la proteína 23 (p23) y SRC. Este complejo de chaperonas mantiene inactivo al AHR, lo que previene su degradación proteasomal y lo mantiene en un estado de alta afinidad por sus ligandos. Tras la unión del agonista al AHR, se produce un cambio de conformación del complejo AHR y algunos componentes del complejo de chaperonas promueven su translocación al núcleo. Las chaperonas son desplazadas por ARNT, el compañero nuclear de AHR. El complejo AHR-ARNT se une a elementos de respuesta a xenobióticos en el ADN para controlar la expresión génica, principalmente de los citocromos P450. La proteína AHRR es un represor de la vía, ya que se une a ARNT, lo que termina la transcripción. AHR sale al citoplasma, donde es degradado por el proteasoma (ver detalles en el texto). Imagen creada con BioRender.com.
El AHR se sobreexpresa, en su forma constitutivamente activa, en células malignas de diferentes tipos de cáncer, como leucemias de células T, de estómago, hígado, pulmón, próstata, páncreas, útero, vejiga, cabeza y cuello, cerebro y piel (11). Con respecto al CaMa, los estudios in vitro han demostrado una sobreexpresión del AHR en las líneas celulares epiteliales CAMA-1, MCF-7, MDA-MB-231 y Hs578T, todas ellas representativas de distintos estadios del CaMa (12).
Por otro lado, la atenuación génica del AHR en las células MDA-MB-231 reduce sus propiedades tumorigénicas, como el aumento de la proliferación y la migración celulares, así como la resistencia a la apoptosis (13, 14). Los estudios in vivo también demuestran la participación del AHR en el desarrollo del CaMa. En un modelo de CaMa en ratas, mediante el uso de 2,4-dimetilbenz[a]antraceno, se observó en el tejido mamario un incremento en los niveles de ARNm del AHR, lo que sugiere que la elevación de la expresión del AHR precede a la formación de tumores (12). Otros estudios demuestran que la capacidad de formación y crecimiento del tumor, así como la metástasis de las células trasplantadas en un modelo murino, inhibe la expresión del AHR (14).
Por otro lado, análisis inmunohistoquímicos de muestras de carcinoma ductal invasivo en pacientes con CaMa han revelado una mayor presencia de la proteína AHR que en las muestras no patológicas (15). Además, un estudio en el que se analizaron muestras de tumores de pacientes diagnosticados con CaMa primario encontró que la expresión del AHR es elevada. Sin embargo, esta expresión es altamente variable, lo que indica una amplia heterogeneidad en la expresión génica del AHR en los tumores de mama y limita la interpretación del AHR como marcador pronóstico de supervivencia (16), lo que evidencia la necesidad de más estudios en este aspecto. Como se comentó anteriormente, los efectos inmunomoduladores de los metabolitos del Trp están mediados por el AHR, lo que sugiere que la sobreexpresión de este factor de transcripción, junto con las enzimas de la vía de Kyn y sus metabolitos, podrían estar estrechamente relacionadas, en particular en un contexto inmunológico.
El AHR, el metabolismo del Trp y el CaMa
La activación del AHR está fuertemente asociada al metabolismo del Trp, ya que los derivados de su metabolito Kyn actúan como potentes agonistas del AHR (17). Más aún, se ha demostrado que el AHR actúa como un regulador positivo de la expresión de las IDO 1 y 2 (18), lo que genera una retroalimentación positiva entre la señalización del AHR y el metabolismo del Trp. En el contexto de un tumor, el estado activo del AHR, promovido por la presencia de metabolitos del Trp, se asocia con una inmunosupresión celular, lo que favorece la proliferación de las células transformadas. Esta circunstancia se debe a que el AHR regula la expresión de la interleucina IL-10, relacionada con la inmunosupresión y el escape de la vigilancia inmunitaria de las células dendríticas y de las células asesinas naturales (NK) (19, 20). Lo anterior se logra mediante la promoción de la fosforilación y la activación de STAT3, que a su vez, favorece la expresión de IL-10 (21). Más aún, la actividad tolerogénica de la IL-10 depende de la presencia del AHR (19).
El AHR también regula la maduración de componentes del sistema inmune innato y adaptativo, como las células dendríticas, macrófagos, las NK, las linfoides innatas (ILC), las T colaboradoras tipo 17 (Th17), las Th22 y las Treg (22). En particular, la diferenciación de las células T vírgenes en Treg ocurre mediante un mecanismo que requiere la activación de la IDO1, la producción de Kyn y la activación del AHR (23), lo que evidencia una ruta dependiente del catabolismo del Trp y de sus metabolitos, así como de la activación del AHR. Por lo tanto, la activación constitutiva del AHR en el tejido mamario tumoral favorece la respuesta inmunitaria tolerogénica, lo que constituye un escenario ideal para el desarrollo y la resistencia del CaMa, particularmente en subtipos agresivos como el triple negativo (24).
El eje Trp-AHR como blanco terapéutico para el tratamiento del CaMa
El eje Trp-AHR consiste en una retroalimentación positiva entre sus componentes y se caracteriza por la sobreexpresión de IDO1 y TDO2, el incremento de los metabolitos del Trp, la activación del AHR y el impacto consecuente en el sistema inmunitario. El resultado final es la supresión de la vigilancia inmunológica, lo que favorece el desarrollo, la progresión y la metástasis del CaMa (25). La identificación del circuito Trp-AHR devela nuevos blancos terapéuticos para el manejo del CaMa. Específicamente, el bloqueo de sus componentes podría formar parte de una estrategia farmacológica contra esta neoplasia. Sin embargo, varios aspectos deben considerarse en la búsqueda de potenciales fármacos como son el nivel de expresión y actividad constitutiva de las enzimas de la vía Kyn y del AHR de acuerdo con el subtipo del tumor, la especificidad, estabilidad y toxicidad de los inhibidores para IDO1, TDO2 o AHR, la exposición a ligandos exógenos del AHR, y finalmente, la idiosincrasia de cada paciente (tolerancia y metabolismo) así como los tratamientos previos que ha recibido (16, 26).
Existen estudios preclínicos y clínicos que han evaluado el potencial terapéutico de algunos inhibidores de la IDO1, como el Indoximod. In vivo, en ratones transgénicos de CaMa MMTV-Neu, el Indoximod combinado con Paclitaxel redujo en un 30 % el volumen tumoral a las dos semanas del inicio del tratamiento (27). Sin embargo, en un ensayo clínico de fase II, doble ciego, aleatorizado y controlado con placebo en pacientes con CaMa metastásico ERBB2 negativo (NCT01792050), la coadministración de Indoximod con Taxano no mejoró la supervivencia general (28).
El Epacadostat es un inhibidor selectivo que compite con el Trp por la unión al dominio catalítico de la IDO1. En ensayos preclínicos en ratones inmunocompetentes con tumores de mama, el Epacadostat redujo el tamaño del tumor, pero no en ratones inmunodeficientes (25). Actualmente, el Epacadostat, en combinación con Pembrolizumab, está siendo evaluado en ensayos clínicos para determinar su seguridad y eficacia en pacientes con tumores de CaMa triple negativos (ECHO-202/KEYNOTE-037) y en diversos tumores sólidos, incluidos los de CaMa (ECHO-207/KEYNOTE-723). De acuerdo con los reportes iniciales del ensayo clínico en pacientes con CaMa triple negativo (NCT02178722), la combinación de Epacadostat y Pembrolizumab es bien tolerada con un efecto antitumoral observado (29).
El Navoximod es un compuesto que se une directamente al grupo hemo de la IDO1 (30). En un ensayo clínico de fase I, junto con Atezolizumab, se administró un inhibidor de PD-L1, una proteína sobreexpresada en diversos tipos de tumores, incluido el de CaMa. Sin embargo, el cotratamiento no mostró resultados distintos de la administración individual de los compuestos, por lo que, hasta ese momento, permanece en duda su verdadera utilidad en la terapia del CaMa (31).
En contraste con la IDO1, se cuenta con pocos antagonistas del AHR con potencial terapéutico. El CH223191, un inhibidor del AHR, bloquea el estadio inmunosupresor e inhibe la metástasis de células 4T1, una línea tumoral de CaMa derivada de ratón (32). Sin embargo, los compuestos que inhiben AHR, como el CH223191, con efectos antitumorogénicos, han demostrado ser muy tóxicos como para ser considerados en estudios clínicos. Lo anterior subraya la necesidad de desarrollar moduladores selectivos de la señalización del AHR no tóxicos. Las investigaciones se han centrado en identificar compuestos derivados de plantas. La tansicolina A-D, un derivado de Salvia miltiorrhiza, actúa como antagonista del AHR. Este compuesto y algunos de sus derivados redireccionan la respuesta inmune hacia un fenotipo antitumoral, con una reducción de la proliferación de varios tipos de células tumorales (33). Otro ejemplo es el extracto de la raíz de Glycyrrhiza glabra, que inhibe la activación del AHR y la proliferación de las células MCF-7 (34).
CONCLUSIONES
A pesar del desarrollo de fármacos eficaces, terapias dirigidas y avances médico-quirúrgicos, el cáncer metastásico sigue siendo incurable. El aspecto más notable del CaMa es que no es una sola entidad y la gran cantidad de subtipos y sus características propias dificultan la identificación de blancos terapéuticos. Aun con esta limitación, varias vías clave continúan siendo identificadas y sometidas a evaluación preclínica. El metabolismo del Trp, en particular la vía de la Kyn y sus enzimas IDO1 y TDO2, así como la vía del AHR, destaca como blanco potencial para el tratamiento futuro de esta enfermedad. Estas dos vías se integran en un eje que conduce a la inmunosupresión. El impacto de este eje depende del nivel de expresión de sus componentes en relación con el subtipo de tumor de mama, observándose la mayor expresión de estos en el CaMa triple negativo. Aunque existen muchos compuestos que inhiben la vía de Kyn, el desarrollo se ha centrado en la IDO1. Si bien los inhibidores de IDO1 han sido evaluados en diversos ensayos clínicos, los resultados han sido poco alentadores para Indoximod y Navoximod, y se espera que Epacadostat continúe su progresión hacia la fase III. La búsqueda de nuevos inhibidores de la vía de la Kyn debe extenderse a otras enzimas productoras de metabolitos, como TDO2, KYNU y KMO. Respecto al AHR, los esfuerzos por identificar ligandos antagonistas útiles para el tratamiento del CaMa se centran en compuestos derivados de diversas especies de plantas. Estrategias in silico para identificar compuestos antagonistas del AHR, en especial medicamentos de uso actual, podrían acelerar el desarrollo de nuevas terapias.
REFERENCIAS
- Sung H, Ferlay J, Siegel RL, Laversanne M, Soerjomataram I, Jemal A, et al. Global Cancer Statistics 2020: GLOBOCAN Estimates of Incidence and Mortality Worldwide for 36 Cancers in 185 Countries. CA Cancer J Clin. 2021;71(3):209-49. doi: 10.3322/caac.21660.
- Mohanty SS, Sahoo CR, Padhy RN. Role of hormone receptors and HER2 as prospective molecular markers for breast cancer: An update. Genes Dis. 2022;9(3):648-58. doi: 10.1016/j.gendis.2020.12.005.
- Atallah NM, Quinn C, Rakha E. HER2 expression in breast cancer: evidence gaps and challenges. NPJ Precis Oncol. 2025;10(1):6. doi: 10.1038/s41698-025-01209-9.
- Loibl S, Poortmans P, Morrow M, Denkert C, Curigliano G. Breast cancer. Lancet. 2021;397(10286):1750-69. doi: 10.1016/S0140-6736(20)32381-3.
- Orrantia-Borunda E, Anchondo-Nunez P, Acuna-Aguilar LE, Gomez-Valles FO, Ramirez-Valdespino CA. Subtypes of Breast Cancer. In: Mayrovitz HN, editor. Breast Cancer. Brisbane (AU)2022.
- Hsu CN, Tain YL. Developmental Programming and Reprogramming of Hypertension and Kidney Disease: Impact of Tryptophan Metabolism. Int J Mol Sci. 2020;21(22). doi: 10.3390/ijms21228705.
- Heng B, Bilgin AA, Lovejoy DB, Tan VX, Milioli HH, Gluch L, et al. Differential kynurenine pathway metabolism in highly metastatic aggressive breast cancer subtypes: beyond IDO1-induced immunosuppression. Breast Cancer Res. 2020;22(1):113. doi: 10.1186/s13058-020-01351-1.
- Lu Z, Zhang C, Zhang J, Su W, Wang G, Wang Z. The Kynurenine Pathway and Indole Pathway in Tryptophan Metabolism Influence Tumor Progression. Cancer Med. 2025;14(6):e70703. doi: 10.1002/cam4.70703.
- Liu Q, Zhai J, Kong X, Wang X, Wang Z, Fang Y, et al. Comprehensive Analysis of the Expression and Prognosis for TDO2 in Breast Cancer. Mol Ther Oncolytics. 2020;17:153-68. doi: 10.1016/j.omto.2020.03.013.
- Avilla MN, Malecki KMC, Hahn ME, Wilson RH, Bradfield CA. The Ah Receptor: Adaptive Metabolism, Ligand Diversity, and the Xenokine Model. Chem Res Toxicol. 2020;33(4):860-79. doi: 10.1021/acs.chemrestox.9b00476.
- Wang Z, Snyder M, Kenison JE, Yang K, Lara B, Lydell E, et al. How the AHR Became Important in Cancer: The Role of Chronically Active AHR in Cancer Aggression. Int J Mol Sci. 2020;22(1). doi: 10.3390/ijms22010387.
- Baker JR, Sakoff JA, McCluskey A. The aryl hydrocarbon receptor (AhR) as a breast cancer drug target. Med Res Rev. 2020;40(3):972-1001. doi: 10.1002/med.21645.
- Benoit L, Jornod F, Zgheib E, Tomkiewicz C, Koual M, Coustillet T, et al. Adverse outcome pathway from activation of the AhR to breast cancer-related death. Environ Int. 2022;165:107323. doi: 10.1016/j.envint.2022.107323.
- Safe S, Zhang L. The Role of the Aryl Hydrocarbon Receptor (AhR) and Its Ligands in Breast Cancer. Cancers (Basel). 2022;14(22). doi: 10.3390/cancers14225574.
- Li Z, Cheng X, Zhuang Z, Wang K. Differential effect of ITE on the aryl hydrocarbon receptor signaling in breast cancer tissue: A histopathological study. Int J Morphol. 2023;41(5):1348-56.
- Tryggvadottir H, Sanden E, Bjorner S, Bressan A, Ygland Rodstrom M, Khazaei S, et al. The Prognostic Impact of Intratumoral Aryl Hydrocarbon Receptor in Primary Breast Cancer Depends on the Type of Endocrine Therapy: A Population-Based Cohort Study. Front Oncol. 2021;11:642768. doi: 10.3389/fonc.2021.642768.
- Shadboorestan A, Koual M, Dairou J, Coumoul X. The Role of the Kynurenine/AhR Pathway in Diseases Related to Metabolism and Cancer. Int J Tryptophan Res. 2023;16:11786469231185102. doi: 10.1177/11786469231185102.
- Kado SY, Bein K, Castaneda AR, Pouraryan AA, Garrity N, Ishihara Y, et al. Regulation of IDO2 by the Aryl Hydrocarbon Receptor (AhR) in Breast Cancer. Cells. 2023;12(10). doi: 10.3390/cells12101433.
- Avancini D, Testori A, Fresolone L, Andolfi G, Vuono M, Martinelli V, et al. Aryl hydrocarbon receptor activity downstream of IL-10 signaling is required to promote regulatory functions in human dendritic cells. Cell Rep. 2023;42(3):112193. doi: 10.1016/j.celrep.2023.112193.
- Piper CJM, Rosser EC, Oleinika K, Nistala K, Krausgruber T, Rendeiro AF, et al. Aryl Hydrocarbon Receptor Contributes to the Transcriptional Program of IL-10-Producing Regulatory B Cells. Cell Rep. 2019;29(7):1878-92 e7. doi: 10.1016/j.celrep.2019.10.018.
- Minacori M, Fiorini S, Perugini M, Iannetta A, Meschiari G, Chichiarelli S, et al. AhR and STAT3: A Dangerous Duo in Chemical Carcinogenesis. Int J Mol Sci. 2025;26(6). doi: 10.3390/ijms26062744.
- Huang W, Rui K, Wang X, Peng N, Zhou W, Shi X, et al. The aryl hydrocarbon receptor in immune regulation and autoimmune pathogenesis. J Autoimmun. 2023;138:103049. doi: 10.1016/j.jaut.2023.103049.
- Campesato LF, Budhu S, Tchaicha J, Weng CH, Gigoux M, Cohen IJ, et al. Blockade of the AHR restricts a Treg-macrophage suppressive axis induced by L-Kynurenine. Nat Commun. 2020;11(1):4011. doi: 10.1038/s41467-020-17750-z.
- Guarnieri T. Aryl Hydrocarbon Receptor Connects Inflammation to Breast Cancer. Int J Mol Sci. 2020;21(15). doi: 10.3390/ijms21155264.
- Girithar HN, Staats Pires A, Ahn SB, Guillemin GJ, Gluch L, Heng B. Involvement of the kynurenine pathway in breast cancer: updates on clinical research and trials. Br J Cancer. 2023;129(2):185-203. doi: 10.1038/s41416-023-02245-7.
- Sarti S, Viansone AA, Serra O, Casadei C, Cecconetto L, Di Menna G, et al. Pharmacological Prevention in Breast Cancer: Current Evidence, Challenges, and Future Directions. Cancers (Basel). 2025;17(22). doi: 10.3390/cancers17223597.
- Muller AJ, DuHadaway JB, Donover PS, Sutanto-Ward E, Prendergast GC. Inhibition of indoleamine 2,3-dioxygenase, an immunoregulatory target of the cancer suppression gene Bin1, potentiates cancer chemotherapy. Nat Med. 2005;11(3):312-9. doi: 10.1038/nm1196.
- Mariotti V, Han H, Ismail-Khan R, Tang SC, Dillon P, Montero AJ, et al. Effect of Taxane Chemotherapy With or Without Indoximod in Metastatic Breast Cancer: A Randomized Clinical Trial. JAMA Oncol. 2021;7(1):61-9. doi: 10.1001/jamaoncol.2020.5572.
- Powderly JD, Klempner SJ, Naing A, Bendell J, Garrido-Laguna I, Catenacci DVT, et al. Epacadostat Plus Pembrolizumab and Chemotherapy for Advanced Solid Tumors: Results from the Phase I/II ECHO-207/KEYNOTE-723 Study. Oncologist. 2022;27(11):905-e848. doi: 10.1093/oncolo/oyac174.
- Opitz CA, Somarribas Patterson LF, Mohapatra SR, Dewi DL, Sadik A, Platten M, et al. The therapeutic potential of targeting tryptophan catabolism in cancer. Br J Cancer. 2020;122(1):30-44. doi: 10.1038/s41416-019-0664-6.
- Jung KH, LoRusso P, Burris H, Gordon M, Bang YJ, Hellmann MD, et al. Phase I Study of the Indoleamine 2,3-Dioxygenase 1 (IDO1) Inhibitor Navoximod (GDC-0919) Administered with PD-L1 Inhibitor (Atezolizumab) in Advanced Solid Tumors. Clin Cancer Res. 2019;25(11):3220-8. doi: 10.1158/1078-0432.CCR-18-2740.
- Han Z, Gong C, Li J, Guo H, Chen X, Jin Y, et al. Immunologically modified enzyme-responsive micelles regulate the tumor microenvironment for cancer immunotherapy. Mater Today Bio. 2022;13:100170. doi: 10.1016/j.mtbio.2021.100170.
- Li Z, Li S, Xing Z, Gu Q, Du R, Jiang J, et al. Discovery of Natural Ah Receptor Antagonists from Salvia miltiorrhiza Bunge and Synthesis of Analogs for Tumor Immunotherapy. J Med Chem. 2024;67(2):1243-61. doi: 10.1021/acs.jmedchem.3c01740.
- Chu XT, de la Cruz J, Hwang SG, Hong H. Tumorigenic effects of endocrine-disrupting chemicals are alleviated by licorice (Glycyrrhiza glabra) root extract through suppression of AhR expression in mammalian cells. Asian Pac J Cancer Prev. 2014;15(12):4809-13. doi: 10.7314/apjcp.2014.15.12.4809.